调节性T细胞(Tregs)维持免疫耐受,但Tregs如何选择性清除同源CD4⁺效应T细胞尚不明确。
2026年9月26日,深圳大学杨平常、刘晓宇、李晨阳共同通讯在Cell Reports(IF=7.7)在线发表题为Antigen-specific regulatory T cells eliminate cognate CD4 effector T cells through perforin, granzyme B, and Bim的研究论文。
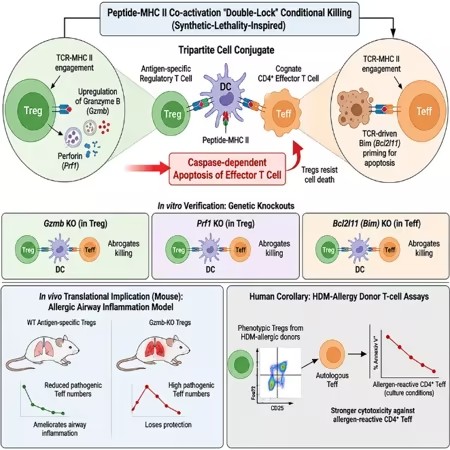
研究提出一种共激活依赖型清除机制,该机制在概念上与合成致死相似。通过体外共培养实验,研究证实Tregs与应答细胞必须同时识别肽-主要组织相容性复合体Ⅱ类分子(peptide-MHCⅡ)才能启动细胞凋亡,即“双重锁”条件。
双重激活可诱导Tregs表达穿孔素(Prf1)与颗粒酶B(Gzmb),而应答细胞则通过T细胞受体(TCR)介导Bim(Bcl2l11)上调,进而变得易被杀伤。特异性敲除Gzmb、Prf1或Bcl2l11会完全阻断该杀伤作用。
在卵清蛋白(OVA)诱导的气道炎症模型中,野生型Tregs可减少肺内效应T细胞并减轻炎症,靶细胞内活化剪切型半胱天冬酶3水平升高,而颗粒酶B缺陷型Tregs无此作用。该效应依赖同源抗原,且不存在Treg表型转化。人体细胞实验重现了上述全部结果。
本研究明确了Treg介导细胞毒性作用严格的分子调控条件,可为过敏性疾病、自身免疫病及肿瘤的治疗策略研发提供理论依据。
调节性T细胞(Tregs)以转录因子Foxp3的表达为特征,约占外周CD4⁺T细胞总数的5%~10%,对维持免疫稳态、预防自身免疫病至关重要。Tregs具备多种已被充分证实的抑制机制。
这类抑制方式大多通过旁观者效应发挥作用,不依赖淋巴细胞自身抗原特异性,即可抑制周围淋巴细胞。广泛的旁观者抑制虽能减轻免疫病理损伤,但也引出一个核心矛盾:Tregs如何在抑制致病性免疫应答的同时,保留机体针对无关病原体的保护性免疫?
越来越多证据表明,Tregs可介导抗原特异性抑制,该机制与过敏性疾病、自身免疫病及肿瘤免疫密切相关。目前学界提出的抗原特异性抑制相关机制包括:形成抑制性免疫突触、环磷酸腺苷(cAMP)转运介导T细胞受体信号抑制、Tregs定向募集至抗原沉积部位。
尽管如此,介导抗原选择性抑制的分子调控规则尚未完全阐明。既往研究显示,Foxp3⁺Tregs可通过颗粒酶B与穿孔素依赖的细胞毒性杀伤效应T细胞,但多个研究团队对该杀伤效应的生理意义存在争议。这些相互矛盾的研究结果提示,Tregs依靠颗粒酶B/穿孔素发挥细胞毒性具有高度环境依赖性,其激活限制条件目前尚不明确。
由多条同步信号共同调控的条件性细胞命运抉择,是细胞生物学中普遍存在的研究主题。研究提出“双钥匙”共激活假说:稳态基础状态下,两种细胞均不会发生凋亡;只有抗原特异性Tregs与同源CD4⁺效应T细胞同时被同一肽-主要组织相容性复合体Ⅱ类分子(peptide-MHC-II)抗原刺激激活时,效应T细胞才会特异性发生凋亡。
该过程存在不对称性:Tregs可存活,与之匹配的效应T细胞则被清除。这提示Tregs自身可能存在内在抵抗机制,或是细胞毒性颗粒的释放仅为单向作用。这种共激活依赖型清除机制,可使Tregs特异性靶向经历抗原刺激的致病性效应T细胞,同时保留识别无关抗原的T细胞克隆。
图形摘要(摘自Cell Reports )
本研究通过体外共培养体系、条件性基因敲除(KO)小鼠品系、过敏性气道炎症过继转移小鼠模型验证上述假说。研究证实,体外环境中Tregs杀伤同源CD4⁺效应T细胞,必须依靠两者共同识别peptide-MHC-II实现共激活。本研究进一步阐明应答T细胞的致敏机制:TCR信号通路上调Bim,使应答细胞易被穿孔素-颗粒酶B介导的杀伤作用清除。
过敏性气道炎症体内过继转移实验证实,野生型抗原特异性Tregs可通过颗粒酶B依赖途径减少致病性效应T细胞数量、缓解炎症表型;上述体内结果与体外模型结论一致,但尚不能直接证明活体组织内确实发生细胞毒性杀伤。
综上,研究借鉴合成致死理论,提出一套抗原依赖型细胞间条件性杀伤的理论模型。该模型从机制层面解释了既往关于Tregs颗粒酶B依赖性细胞毒性的各类矛盾研究结果,也可为过敏性疾病、自身疫病及恶性肿瘤的新型治疗策略研发提供思路。